Inmunología

Introducción

La disciplina de la inmunología surgió a partir de la observación de que los individuos que se habían recuperado de ciertas enfermedades infecciosas a partir de entonces estaban protegidos contra la enfermedad.

El término en latin inmunis, que significa "excento", es la fuente de la palabra que hoy en día conocemos como inmunidad, se le conoce así ya que individuos recuperados de algunas pestes podían cuidar a los enfermos sin contraer la enfermedad de nuevo. Tucídides, el gran historiador de la guerra del Peloponeso se dió cuenta de esto 430 a.C.

Si bien las primeras sociedades reconocieron el fenómeno de la inmunidad, transcurrieron casi 2 000 años antes de que el concepto se convirtiera de manera exitosa en práctica médicamente eficaz.

Historia de la Inmunología

Los primeros intentos registrados por inducir deliberadamente inmunidad fueron efectuados por los chinos y los turcos durante el siglo xv. Estuvieron tratando de prevenir la viruela, una enfer- medad que es mortal en alrededor de 30% de los afectados, y que deja a los sobrevivientes desfigurados de por vida

En 1798, el médico Edwar Jenner observó que las ordeñadoras que habían contraído la enfermedad de la viruela vacuna no enfermaban de nuevo. Así que, analizó e introdujo líquido de las pústulas de la viruela vacuna en un niño de 8 años (inoculación) y luego, infectó intencionalmente al niño con el virus. Como, predijo, el niño no enfermó.

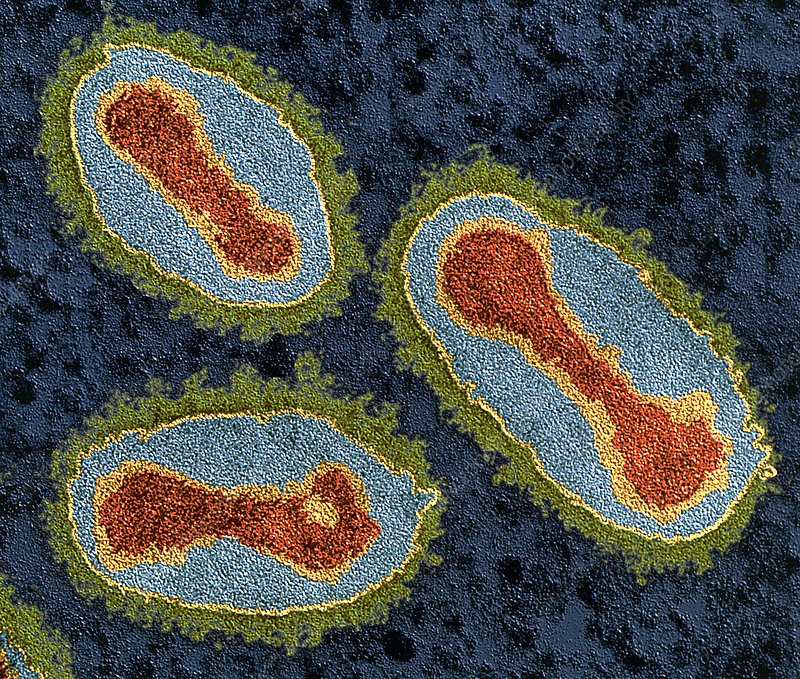
virus de la viruela por micografía electrónica de
                    transmisión a color(TEM)
Cómo se puede ver hoy en día el virus de la viruela por micografía electrónica de transmisión a color(TEM).

Años más tarde, Luis Pasteur realizó experimentos con la bacteria que causa cólera aviar, la cultivó y la inyectó en pollos resultando la muerte de los mismos. Al regresar de vacaciones continuó con los experimentos inyectando cultivo viejo de la bacteria a un nuevo grupo de pollos, observando que las aves se recuperan.

Al no cumplirse lo que esperaba, realizó cultivos nuevos del cólera aviar y se lo inyectó a dos grupos de aves:

  • el grupo de pollos recuperados del cultivo viejo de cólera y
  • un grupo de pollos que nunca habian sido expuestos a la enfermedad.

El resultado fue la recuperación del primer grupo de pollos y la muerte del segundo

Pasteur emitió la hipótesis de que el envejecimiento había debilitado la virulencia del agente patógeno, y esta cepa debilitada o atenuada podía administrarse para proporcionar inmunidad contra la enfermedad; más tarde demostró que así era. Llamó a esta cepa atenuada una vacuna (del latín vacca, que significa “vaca”) en honor de la investigación de Jenner con la inoculación de viruela vacuna.

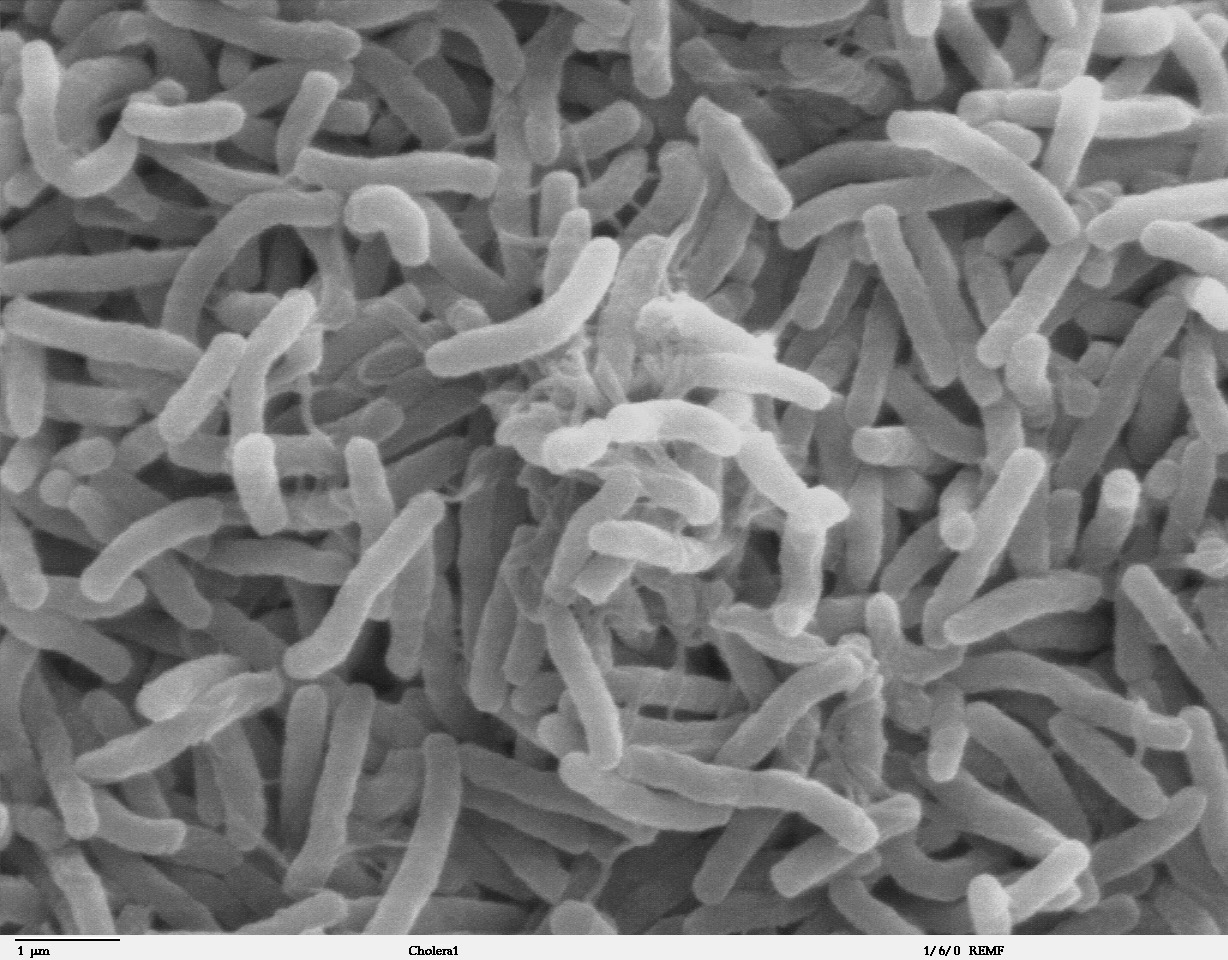
Bacteria de la cólera vista por microscopía electrónica de barrido (SEM)

Resistencia de los microorganismos

Como se dijo en el segmento anterior, el ser humano ha trabajado, casi desde principios de la humanidad, en estrategias para ganar la batalla contra el mundo de patógenos creando agentes químicos diseñados para destruir ciertos tipos de bacterias y algunos virus. Sin embargo, se ha observado que a lo largo de los años, ciertas cepas de bacterias han generado resistencia preocupante a antibióticos, lo que hace que el diseño de fármacos de siguiente generación y de nuevas clases de fármacos adquiera importancia creciente. Si bien también se dispone de fármacos antivirales, casi ninguno es eficaz contra muchos de los virus más comunes, incluso el de la gripe.

Esto hace que la vacunación preventiva sea el único recurso real contra muchos agentes infecciosos debilitantes, incluso los que rara vez causan mortalidad en adultos sanos. Por ejemplo, debido a la alta tasa de mutaciones del virus de la gripe, cada año debe prepararse una nueva vacuna contra la gripe con base en una predicción de los genotipos prominentes que es probable que se encuentren en la siguiente temporada; esta vacuna es más eficaz en algunos años que en otros. Si surge una cepa endémica más mortal e inesperada, habrá una carrera entre su diseminación y la manufactura de una nueva vacuna y la administración de la misma.

Inmunidad Humoral y Celular

Pasteur mostró que la vacunación funcionaba, pero no entendió cómo. En la búsqueda de estas razones, en 1883 Elie Metchnikoff, ganador del Premio Nobel, demostró que las células estan involucradas en el sistema inmune. Metchnikoff observó que ciertos leucocitos, que denominó fagocitos, ingirieron (fagocitaron) microorganismos y otro material extraño. Aedmás, notó que estas células fagocíticas eran más activas en animales que habían sido inmunizados. Éstas células probablemente fueron, lo que hoy en día se conocen mejor como monocitos y neutrófilos de la sangre

En 1890 Emil von Behring y Shibasaburo Kitasato, también investigaron las razones que Pasteur no pudo explicar, y demostró que el suero —el componente líquido, no celular, recuperado a partir de sangre coagulada— de animales previamente inmunizados con difteria podía transferir el estado inmune a animales no inmunizados.

Durante el decenio de 1930-1939 por los esfuerzos de Elvin Kabat, se mostró que todas estas actividades dependían de una fracción del suero llamada inicialmente globulina gamma (ahora inmunoglobulina). Las moléculas activas solubles en la fracción de inmunoglobulina del suero ahora se denominan comúnmente anticuerpos. Dado que estos anticuerpos se encontraban en los líquidos corporales (conocidos en esa época como los “humores” corporales), los eventos inmunitarios en los cuales participaron se llamaron inmunidad humoral.

Con el surgimiento de técnicas mejoradas de cultivo de células y de transferencia de las mismas durante el decenio de 1950-1959, se identificó al linfocito como el tipo de célula del cual dependen las inmunidades tanto celular como humoral. Poco después, experimentos con pollos, iniciados por Bruce Glick en la Mississippi State University, indicaron la existencia de dos tipos de linfocitos:

  • Linfocitos T (derivados del Timo)
  • Linfocitos B (derivados de la bolsa de Fabricio en las aves o de médula ósea en mamíferos)

Ahora se sabe que la inmunidad celular es impartida por las células T y que los anticuerpos producidos por las células B confieren inmunidad humoral.

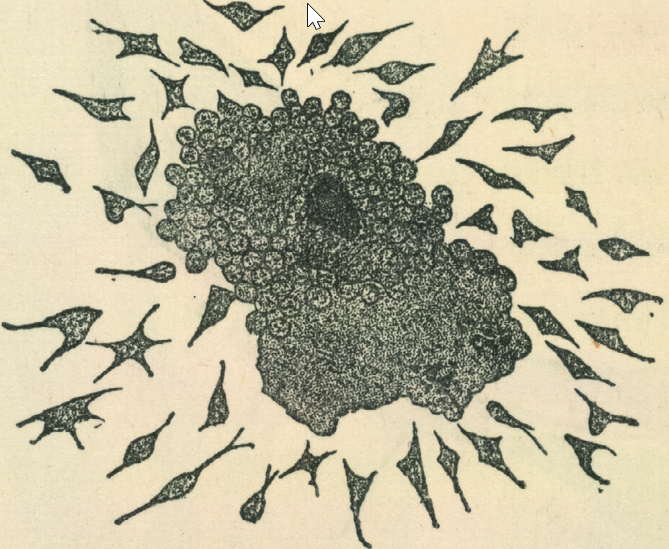
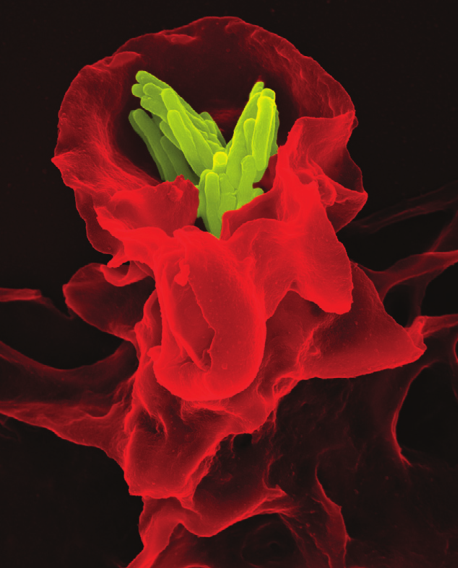
Dibujo de células fagocíticas que rodean una partícula extraña fagocito fagocitando la bacteria que causa la tuberculosis
Dibujo por Elie Metchnikoff de células fagocíticas que rodean una partícula extraña (izquierda), e imagen moderna de un fagocito fagocitando la bacteria que causa la tuberculosis (derecha).

Reconocimiento de antígenos

Alrededor de 1900, Jules Bordet en el Pasteur Institute expandió el concepto de inmunidad más allá de las enfermedades infecciosas, al demostrar que sustancias no patogénicas, como eritrocitos de otras especies, también podían servir como antígenos, el término general para cualquier sustancia que desencadena una respuesta específica por linfocitos B o T.

Las investigaciones procedentes mostraron que inyectar casi cualquier sustancia química orgánica extraña a un animal podía inducir producción de anticuerpos que se unirían de manera específica a la sustancia química. Estos estudios demostraron que los anticuerpos tienen una capacidad de un rango de reactividad casi ilimitado, incluso respuestas a compuestos que sólo se habían sintetizado recientemente en el laboratorio, ¡y que de otro modo no se encontraban en la naturaleza! Además, se mostró que moléculas que diferían en el más pequeño detalle, como un solo aminoácido, podían ser distinguidas por su reactividad con diferentes anticuerpos.

De acuerdo con la teoría de Paul Ehrlich en 1900, la especificidad del receptor estaba determinada en el huésped antes de su exposición al antígeno extraño y, por ende, el antígeno seleccionaba el receptor apropiado. Por ende, se requiere un ejército de células, cada una con una especificidad de antígeno diferente. La célula B seleccionada puede ser desencadenada para que prolifere y para que secrete muchas copias de estos receptores en forma soluble (ahora llamados anticuerpos) una vez que ha sido seleccionada por unión a antígeno.

Ahora se sabe que las células B producen anticuerpos, una versión soluble de su proteína receptora, que se unen a proteínas extrañas, y las marcan para destrucción. Las células T, de las cuales hay varias formas, también usan sus receptores de célula T unidos a superficie para detectar antígeno. Estas células pueden desempeñar una gama de funciones una vez seleccionadas por encuentro con antígeno, incluso la secreción de compuestos solubles para ayudar a otros leucocitos (como linfocitos B), y a la destrucción de células huésped infectadas.
Moléculas de reconocimiento de antígenos

Casi todos los agentes patógenos expresan al menos algunas estructuras químicas que típicamente no se encuentran en mamíferos.

  • Patrones moleculares asociados con agente patógeno (o PAMP): son estructuras extrañas comunes que caracterizan grupos enteros de agentes patógenos.
  • Los leucocitos expresan de manera natural diversos receptores, denominados en conjunto Receptores de Reconocimiento de Patrón (PRR).

Los animales, tanto invertebrados como vertebrados, han evolucionado para expresar varios tipos de proteínas de superficie celular y solubles que reconocen con rapidez muchos de estos PAMP, una forma de establecimiento de perfil de agente patógeno; por ejemplo, las bacterias encapsuladas poseen una cubierta de polisacárido con una estructura química singular que no se encuentra en otras células bacterianas o de ser humano.

Cuando los prr detectan estas estructuras químicas, una cascada de eventos marca el agente patógeno para destrucción. Los prr son proteínas codificadas en el dna genómico y siempre son expresados por muchas células inmunitarias diferentes. Así, estas moléculas de reconocimiento codificadas por la línea germinal, conservadas, son una primera línea de defensa para la detección rápida de muchos de los identificadores químicos típicos portados por los invasores más comunes.

Un corolario importante y potente para esto es que permite la categorización o el rápido establecimiento de perfil de la clase de agente patógeno en cuestión; esto es clave para las rutas que la respuesta inmunitaria seguirá después y, por ende, para la adaptación fina de la respuesta inmunitaria conforme se desarrolle.